Beschreibung
Epithalon ist ein kurzes synthetisches Tetrapeptid mit zwei sauren Resten und sehr guter Löslichkeit in wässrigen Medien. So kurze Sequenzen lösen sich nahezu sofort — Erwärmen oder kräftiges Bewegen über leichtes Schwenken hinaus ist nicht nötig.
Epithalon: Was die veröffentlichte Forschung zeigt
Zusammengestellt von NADA-Labs aus der unten zitierten Fachliteratur. Keine eigenen Studiendaten.
Epithalon (Epitalon, Epithalone; Ala-Glu-Asp-Gly, AEDG) ist ein synthetisches Tetrapeptid, das auf Grundlage der Aminosäureanalyse von Epithalamin, einem Peptidextrakt der Zirbeldrüse, entworfen wurde. Die in der Literatur untersuchten Mechanismen sind die Induktion der hTERT-Expression und Telomerverlängerung, antioxidative und mitochondriale Effekte, die Modulation der pinealen Melatoninausschüttung sowie, in transgenen und Karzinogen-Modellen, eine verringerte Tumormultiplizität. Die Primärarbeiten bestehen überwiegend aus Lebensspannen- und Karzinogenese-Experimenten an Nagetieren sowie In-vitro-Zellkulturstudien; der Großteil stammt von der Gruppe Khavinson/Anisimov (St. Petersburg), ergänzt um wenige unabhängige In-vitro-Studien, die seit 2022 veröffentlicht wurden.
Evidenzbasis: Überwiegend Lebensspannen-/Karzinogenese-Modelle an Nagetieren (Mäuse, Ratten) und In-vitro-Zellkultur (humane Zelllinien, Maus-Oozyten, Drosophila); keine randomisierte kontrollierte Studie am Menschen. Eine unkontrollierte Fallserie am Menschen (Netzhautdegeneration) mit ausschließlich qualitativem Endpunkt. Der Großteil der In-vivo-Arbeiten stammt von einer einzigen Forschungsgruppe (Khavinson/Anisimov, St. Petersburg); zwei unabhängige In-vitro-Studien (Großbritannien 2025, China 2022) liegen vor.
Schlüsselstudien im Überblick
| Studie | Modell | Design | Hauptergebnis | Gruppe |
|---|---|---|---|---|
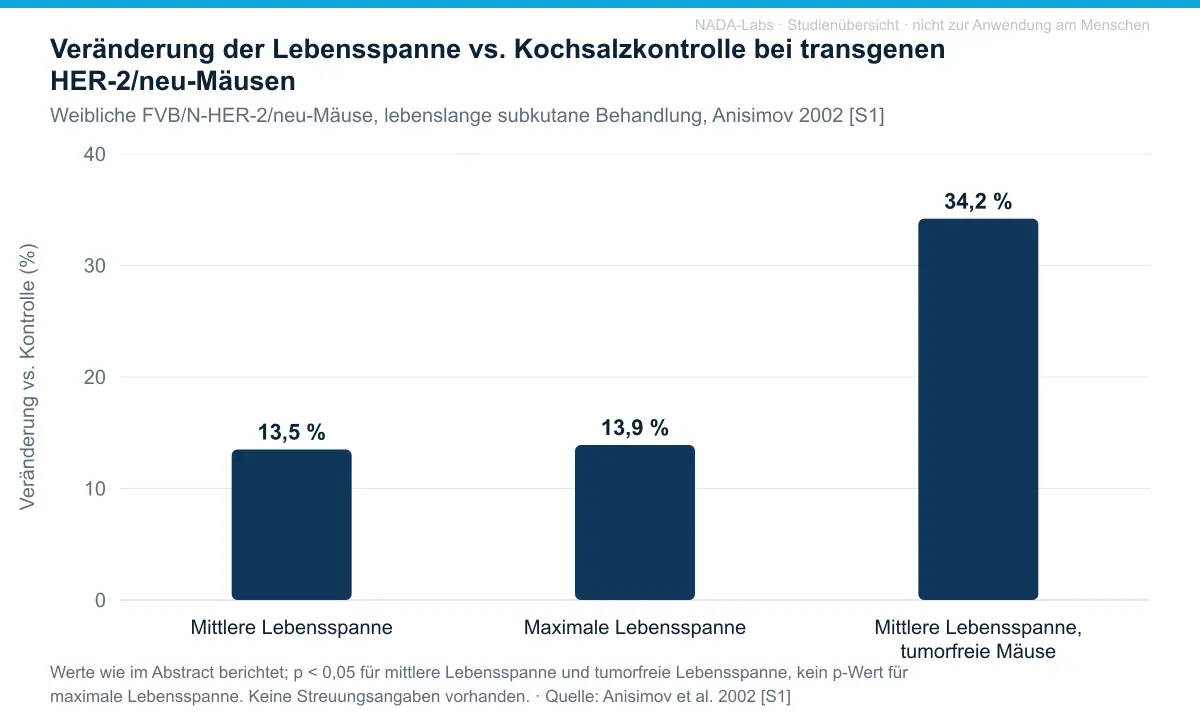
| Anisimov 20021 | Transgene HER-2/neu-Mäuse | Kochsalzlösung vs. Peptid, lebenslang s.c. | Mittlere Lebensspanne +13,5 %, maximale +13,9 %; tumorfreie Mäuse 3,7-fach mehr; Lungenmetastasen 1,6-fach weniger | Khavinson/Anisimov |
| Anisimov 20032 | SHR-Mäuse, normale Alterung, n = 54/Gruppe | Kochsalzlösung vs. Peptid, lebenslang s.c. | Mittlere Lebensspanne unverändert; letzte 10 % der Überlebenden +13,3 %; Chromosomenaberrationen −17,1 %; Tumoren gesamt unverändert | Khavinson/Anisimov |
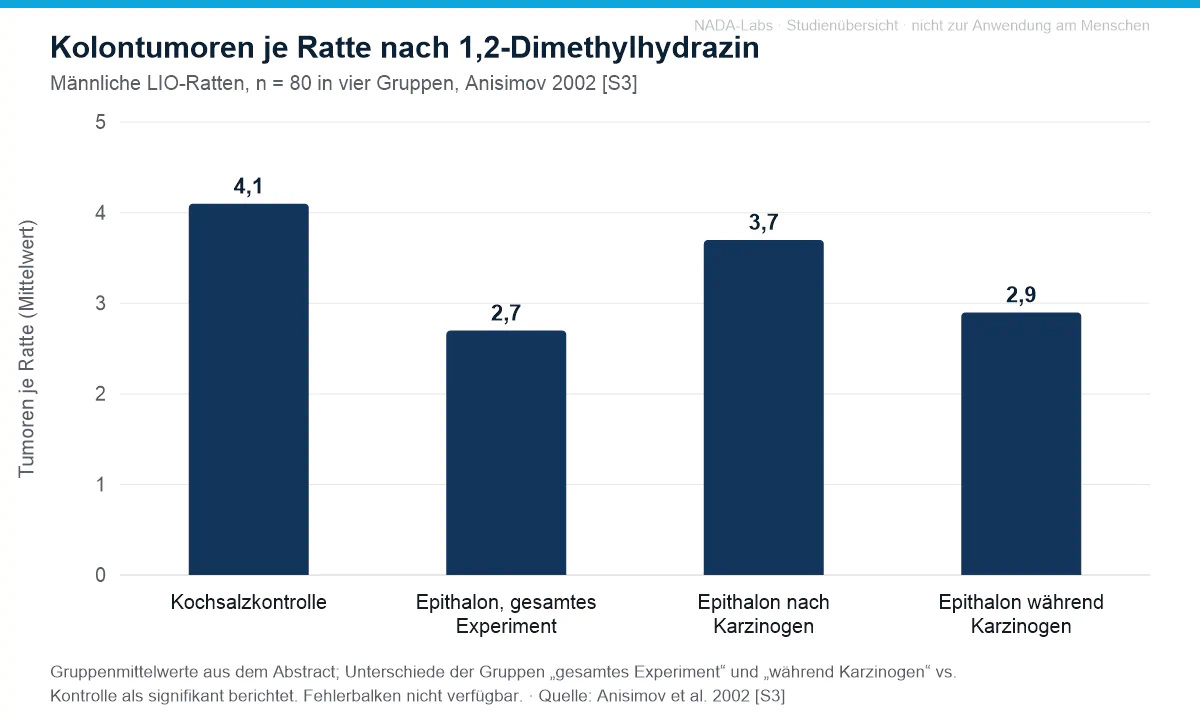
| Anisimov 20023 | DMH-Kolonkarzinogenese, Ratten, n = 80 | Vier Gruppen nach Behandlungsfenster | Tumoren je Ratte 4,1 auf 2,7 (kontinuierlich); Karzinominzidenz weiterhin 90–100 % | Khavinson/Anisimov |
| Khavinson 20004 | Drosophila melanogaster | Exposition während der Entwicklung über das Medium | Lebensspanne der Imagines +11–16 % | Khavinson |
| Al-Dulaimi 20255 | Humane Mammakarzinom- und normale Zelllinien | Unbehandelt vs. behandelt, 4 Tage / 3 Wochen | Telomerase 4- bis 26-fach in normalen Zellen; Telomere 2,4 auf 4 kb in 21NT über ALT (10-fach) | Unabhängig (Brunel, Großbritannien) |
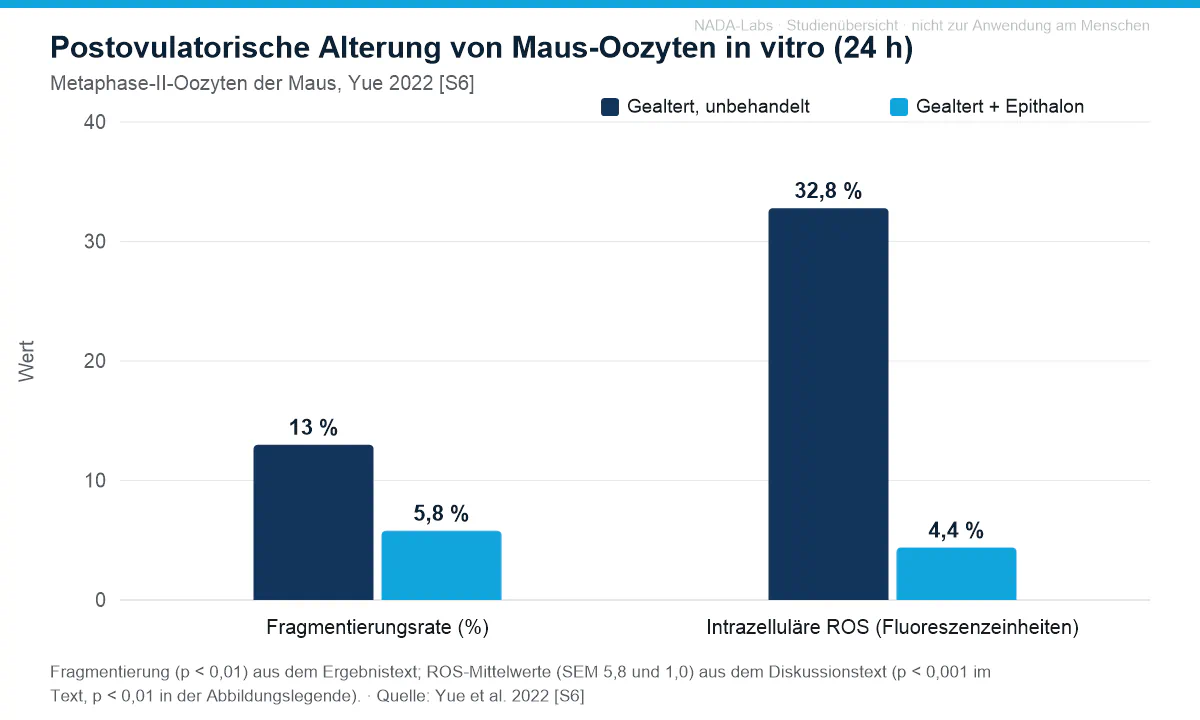
| Yue 20226 | In vitro gealterte Maus-Oozyten | Frisch / gealtert / gealtert + Peptid | Fragmentierung 13 % auf 5,8 %; ROS 32,8 auf 4,4 Einheiten | Unabhängig (China) |
| Khavinson 20027 | Campbell-Ratten + Netzhautdegeneration beim Menschen | Unkontrollierte Fallserie (Mensch) | „Positiver klinischer Effekt“ bei 90 % der Patienten; kein n, keine Kontrolle | Khavinson |
Telomerbiologische Messgrößen nach Zelltyp (Al-Dulaimi 2025 [S5])
| Zelllinie | Zelltyp | Exposition | Telomerlänge | hTERT-mRNA | Telomeraseaktivität | ALT-Aktivität |
|---|---|---|---|---|---|---|
| 21NT | Mammakarzinom (telomerasepositiv) | 4 Tage | 2,4 kb auf 4 kb | 12-fach erhöht | keine signifikante Veränderung | 10-fach erhöht |
| BT474 | Mammakarzinom (telomerasepositiv) | 4 Tage | bis zu 8 kb | 5-fach erhöht | keine signifikante Veränderung | 3-fach erhöht |
| IBR.3 | Normale Fibroblasten | 3 Wochen | signifikante Zunahme (keine nach 4 Tagen) | erhöht (geringer als Tumorlinien) | 4-fach erhöht | keine Zunahme |
| HMEC | Normales Mammaepithel | 3 Wochen | signifikante Zunahme | erhöht (geringer als Tumorlinien) | 26-fach erhöht | nicht signifikante Zunahme |
In den Studien berichtete Effekte
- Lebensspanne in Nagetier- und Insektenmodellen. Bei transgenen HER-2/neu-Mäusen stieg die mittlere Lebensspanne um 13,5 % (p < 0,05) und die maximale Lebensspanne um 13,9 % vs. Kochsalzlösung1. Bei normal alternden SHR-Mäusen war die mittlere Lebensspanne unverändert, die letzten 10 % der Überlebenden lebten jedoch 13,3 % länger (p < 0,01) und die maximale Lebensspanne war um 12,3 % höher2. Bei Drosophila erhöhte die Exposition während der Entwicklung die Lebensspanne der Imagines um 11–16 %4.
- Tumormultiplizität und Metastasierung in Karzinogenese-Modellen. Der Anteil mammatumorfreier HER-2/neu-Mäuse stieg 3,7-fach, Lungenmetastasen sanken 1,6-fach (beides p < 0,05)1. Bei DMH-behandelten Ratten sanken die Kolontumoren je Tier bei kontinuierlicher Behandlung von 4,1 auf 2,7, wobei weiterhin 90–100 % der Tiere Karzinome entwickelten3. Bei SHR-Mäusen war die Gesamtinzidenz spontaner Tumoren unverändert, bei 6-fach niedrigerer Leukämieinzidenz2.
- Telomerlänge und Telomerase in humanen Zellen. In normalen Fibroblasten und Mammaepithelzellen stieg die Telomeraseaktivität 4-fach bzw. 26-fach, mit signifikanter Zunahme der Telomerlänge nach 3 Wochen; in Mammakarzinomlinien verlängerten sich die Telomere innerhalb von 4 Tagen von 2,4 auf 4 kb (21NT) über ALT-Aktivierung (10-fach) und nicht über Telomerase5.
- Oxidativer Stress und Oozytenqualität in vitro. In 24 h in vitro gealterten Maus-Oozyten sanken die ROS von 32,8 auf 4,4 Fluoreszenzeinheiten und die Fragmentierung von 13 % auf 5,8 % (p < 0,01), bei höherem mitochondrialem Membranpotenzial (p < 0,01) und geringerer früher Apoptose (p < 0,05)6.
- Marker der genomischen Stabilität. Chromosomenaberrationen in Knochenmarkzellen von SHR-Mäusen lagen 17,1 % unter der Kontrolle (p < 0,05)2.
- Netzhautdegeneration. Die Netzhautfunktion wurde bei Campbell-Ratten als erhalten berichtet, und in einer unkontrollierten Serie ohne angegebenes n oder Effektgröße wurde bei 90 % der Patienten ein „positiver klinischer Effekt“ berichtet7.
Berichtete Nebenwirkungen und Verträglichkeit
- Keine manifeste Toxizität bei lebenslanger Verabreichung an Nagetiere. SHR-Mäuse, n = 54 je Gruppe, Injektionen ab einem Alter von 3 Monaten bis zum Tod: Futteraufnahme, Körpergewicht und Gesamttumorinzidenz unverändert; die Autoren beschreiben die Langzeitanwendung als sicher2. Kossoy 2006 (weibliche C3H/He-Mäuse, 6,5 Monate; PMID 16634527) berichtete ebenfalls keinen toxischen Effekt.
- Telomerverlängerung in Tumorzellen (theoretisches Bedenken hinsichtlich Tumorförderung). In den telomerasepositiven Mammakarzinomlinien 21NT und BT474 verlängerte das Peptid die Telomere (2,4 auf 4 kb; bis zu 8 kb) über eine 10-fache bzw. 3-fache ALT-Aktivierung; in normalen Fibroblasten wurde ALT nicht aktiviert. Die Relevanz in vivo ist ungeprüft5.
- Tumorinzidenz nicht in jedem Modell verringert. Die Inzidenz von Kolonkarzinomen blieb bei DMH-behandelten Ratten bei 90–100 %3; die Gesamtinzidenz spontaner Tumoren bei SHR-Mäusen war unverändert2; bei weiblichen Ratten hingen die Effekte auf Lebensspanne und Spontantumoren vom Beleuchtungsregime ab und fehlten unter einem Standard-Tag/Nacht-Regime (Vinogradova 2007, PMID 18856211).
- Verträglichkeitsdaten am Menschen. Es existiert lediglich eine unkontrollierte Fallserie zur Netzhaut; unerwünschte Ereignisse wurden nicht systematisch erfasst7. Keine publizierte randomisierte Studie liefert Sicherheitsdaten zu diesem Peptid.
- Neuroendokrine und ZNS-Aktivität. Die intranasale Anwendung bei urethananästhesierten Ratten erhöhte die spontane Entladungsfrequenz kortikaler Neuronen 2- bis 2,5-fach (Sibarov 2007, PMID 17955380); bei alten weiblichen Rhesusaffen wurde die abendliche Melatoninproduktion stimuliert und der Cortisolrhythmus verändert (Goncharova 2001, PMID 11550036, qualitatives Abstract). Das Peptid ist im ZNS pharmakologisch aktiv; die klinische Relevanz ist unbekannt.
Grenzen der Evidenz. Nahezu die gesamte In-vivo-Evidenz stammt von einer St. Petersburger Gruppe (Khavinson/Anisimov), häufig publiziert mit Abstracts, die Gruppengrößen und Streuungsmaße nicht angeben; eine unabhängige Replikation der Befunde zu Lebensspanne und Karzinogenese fehlt. Die Zugewinne an Lebensspanne waren moderat und modellabhängig (keine Veränderung der mittleren Lebensspanne bei SHR-Mäusen; vom Beleuchtungsregime abhängige Effekte bei Ratten), und die Karzinominzidenz wurde im DMH-Modell nicht verringert. Die einzigen Humandaten sind eine unkontrollierte Fallserie zur Netzhaut mit qualitativem Endpunkt und ohne systematische Erfassung unerwünschter Ereignisse. Die unabhängige Zellstudie von 2025 zeigt eine Telomerverlängerung in Mammakarzinomlinien über ALT, einen Mechanismus, dessen In-vivo-Relevanz ungeprüft ist; beide unabhängigen Studien sind 2D-In-vitro-Arbeiten.
Literatur
- Anisimov VN, Khavinson VKh, Alimova IN, Semchenko AV, Yashin AI (2002). Epithalon decelerates aging and suppresses development of breast adenocarcinomas in transgenic her-2/neu mice. Bull Exp Biol Med. PMID 12459848 DOI
- Anisimov VN, Khavinson VKh, Popovich IG, Zabezhinski MA, Alimova IN, Rosenfeld SV, Zavarzina NY, Semenchenko AV, Yashin AI (2003). Effect of Epitalon on biomarkers of aging, life span and spontaneous tumor incidence in female Swiss-derived SHR mice. Biogerontology. PMID 14501183 DOI
- Anisimov VN, Khavinson VKh, Popovich IG, Zabezhinski MA (2002). Inhibitory effect of peptide Epitalon on colon carcinogenesis induced by 1,2-dimethylhydrazine in rats. Cancer Lett. PMID 12049808 DOI
- Khavinson VK, Izmaylov DM, Obukhova LK, Malinin VV (2000). Effect of epitalon on the lifespan increase in Drosophila melanogaster. Mech Ageing Dev. PMID 11087911 DOI
- Al-Dulaimi S, Thomas R, Matta S, Roberts T (2025). Epitalon increases telomere length in human cell lines through telomerase upregulation or ALT activity. Biogerontology. PMID 40908429 DOI
- Yue X, Liu SL, Guo JN, Meng TG, Zhang XR, Li HX, Song CY, Wang ZB, Schatten H, Sun QY, Guo XP (2022). Epitalon protects against post-ovulatory aging-related damage of mouse oocytes in vitro. Aging (Albany NY). PMID 35413689 DOI
- Khavinson V, Razumovsky M, Trofimova S, Grigorian R, Razumovskaya A (2002). Pineal-regulating tetrapeptide epitalon improves eye retina condition in retinitis pigmentosa. Neuro Endocrinol Lett. PMID 12195242 Humanstudie
Dieser Abschnitt fasst Befunde aus der zitierten, begutachteten Fachliteratur zu Informationszwecken zusammen. Er ist keine Aussage über Wirksamkeit oder Sicherheit, enthält bewusst keine Dosierungs- oder Anwendungsangaben und stellt keine medizinische, veterinärmedizinische oder wissenschaftliche Beratung dar. Ergebnisse aus Zellkulturen oder Tiermodellen lassen keine Rückschlüsse auf Wirkungen beim Menschen zu.